- +1
王磊/王志珍:蛋白质氧化折叠保真性及内质网氧化还原稳态
原创 Cell Press CellPress细胞科学
 生命科学
Life science
真核细胞内质网中巯基氧化酶Ero1和蛋白质二硫键异构酶PDI构成了催化蛋白质氧化折叠的主要通路。维持蛋白质氧化折叠的高效性和保真性对分泌细胞的功能至关重要。近年来的研究逐渐认识到,内质网氧化还原稳态的失衡与许多重大疾病密切相关。
近日,中国科学院生物物理研究所的王磊研究员(通讯作者)和王志珍院士共同在Cell Press细胞出版社旗下Trends in Biochemical Sciences期刊在线发表了题为“Oxidative protein folding fidelity and redoxtasis in the endoplasmic reticulum”的综述,全面地总结了酵母、植物和哺乳动物的蛋白质氧化折叠机制,重点阐述了维持蛋白质氧化折叠保真性和内质网氧化还原稳态的机制,深入讨论了蛋白质氧化折叠保真性在不同病理和生理中的作用,以及靶向蛋白质氧化折叠进行疾病干预的可能性。
▲长按识别二维码阅读论文
1.内质网是真核细胞蛋白质氧化折叠的主要场所
真核细胞中约1/3的蛋白质是分泌蛋白和膜蛋白,这些蛋白质往往富含二硫键。新生肽链中二硫键的形成过程被称为蛋白质氧化折叠 [1]。内质网拥有一整套包括折叠酶和分子伴侣在内的"质量控制"系统为蛋白质氧化折叠提供了保障。此外,内质网腔偏氧化的环境有利于二硫键形成,例如内质网的谷胱甘肽还原电位(EGSH)约为-200 mV,远高于胞浆(约-300 mV) [2]。然而,内质网氧化还原稳态失衡和未折叠/错误折叠蛋白异常积累极易导致内质网应激和相关疾病。因此,研究细胞如何保证蛋白质氧化折叠的高效性和保真性,以及如何维持内质网氧化还原稳态,具有十分重要的科学意义。
2.内质网中蛋白质氧化折叠及氧化还原稳态
蛋白质氧化折叠的主要通路由巯基氧化酶Ero1和蛋白质二硫键异构酶PDI构成。PDI负责催化底物蛋白中二硫键的形成,而Ero1则负责为PDI提供上游氧化力,这一过程消耗O2,同时产生H2O2 [3]。ERO1的缺失对酵母是致死的,ero1和ero2双突变对拟南芥也是致死的。然而,ERO1双突变小鼠仍能存活,这意味着在哺乳动物中ERO1基因功能可通过其他替代途径补偿。虽然氧化对于蛋白质氧化折叠是必要的,但还原对于防止错误二硫键的形成和维持内质网氧化还原稳态同样重要。与氧化途径相比,还原途径尚没有得到很好的阐明。已有的研究表明,胞浆中的还原通路可能对于内质网二硫键还原也起到作用。此外,Ero1的氧化酶活性可以通过负反馈调节机制来控制,以防止内质网过氧化。
所有催化二硫键形成的酶途径都需要PDI蛋白作为二硫键“搬运工”。相较于酵母,高等真核生物中进化出大量PDI同源物。对此,目前学术界有两种解释:1)不同的PDI表现出不同的底物特异性,2)在蛋白质氧化折叠过程中,PDI家族成员(PDIs)表现出协同的分工机制,其中一组PDIs更有效地将氧化力从上游氧化酶转移到底物,而另一组PDIs则主要是作为异构酶来纠正错误的二硫键。两组PDIs协同工作,以保证高效和精准地形成二硫键。
3.Ero1氧化酶的催化和调控机制
Ero1蛋白由两个功能区组成:一个包含FAD辅基结合位点和邻近的内部活性中心的四螺旋束核心区,以及一个带有外部活性中心的柔性环(也称为“穿梭环”或“调节环”)。外部活性中心从PDI接收电子,并通过FAD将电子转移到内部活性中心,最终转移到O2,消耗的O2被还原为等摩尔的H2O2分子(图1A)。最近的一项研究表明,H2O2可以通过内质网定位的水通道蛋白运输出内质网。无论是在内质网中还是在胞浆中,Ero1的氧化酶活性都需要被精确调控,以满足蛋白质氧化折叠的需要,同时防止氧化应激。
人源Ero1α的活力调节机制十分精巧,受到自身柔性环上的调控二硫键的负反馈调节。如果内质网的环境偏向还原,还原态的PDI能打开Ero1α的调控二硫键使其激活促进氧化折叠;反之,如果内质网的环境偏向氧化,氧化态的PDI能关闭Ero1α的调控二硫键使其失活防止氧化应激。不仅如此,王志珍/王磊团队近年来的工作表明Ero1α的活性还可以被其它翻译后修饰(PTMs)调节。在还原应激条件下,Ero1α的Ser145位点可以被分泌途径蛋白激酶 Fam20C磷酸化,显著提高Ero1α的氧化酶活性 [4]。相反, Ero1α Cys166位点亚硝基化修饰水平随着衰老升高导致其氧化酶活性降低 [5]。如AlphaFold预测的结构所示,Ser145和Cys166也处于柔性环上(图1B)。因此,Ero1α的柔性环可能包含不同的调控元件以调节其氧化酶活性,应对内质网环境的变化。此外,植物Ero1活性也能被调控二硫键变构调节,但迄今为止还没有关于其PTMs修饰的报道。
酵母Ero1p虽然也有调控二硫键,但其并不行使“开关”的功能,而是像“变阻器”一样调节Ero1p的活力。Ero1p在基础状态维持低氧化酶活力,只有在极度还原的条件下,其活力才会被上调。AlphaFold结构显示Ero1p的柔性环与螺旋束核心紧密相连,而人Ero1α的“调节环”则松散地连接在螺旋束核心上(图1B)。这些特征支持这样一种观点,即Ero1p是一种“迟钝”的氧化酶,对环境变化的反应性较低,而Ero1α经过进化,对各种形式的调控非常敏感。鉴于人类细胞含二硫键蛋白的数目和复杂程度远高于酵母细胞,因此人类细胞对蛋白质氧化折叠的保真性有着更高的需求。Ero1α活力的快速精准调节,一方面有利于维持众多含二硫键蛋白质的折叠效率,另一方面可以将内质网的过度氧化风险降至最低。
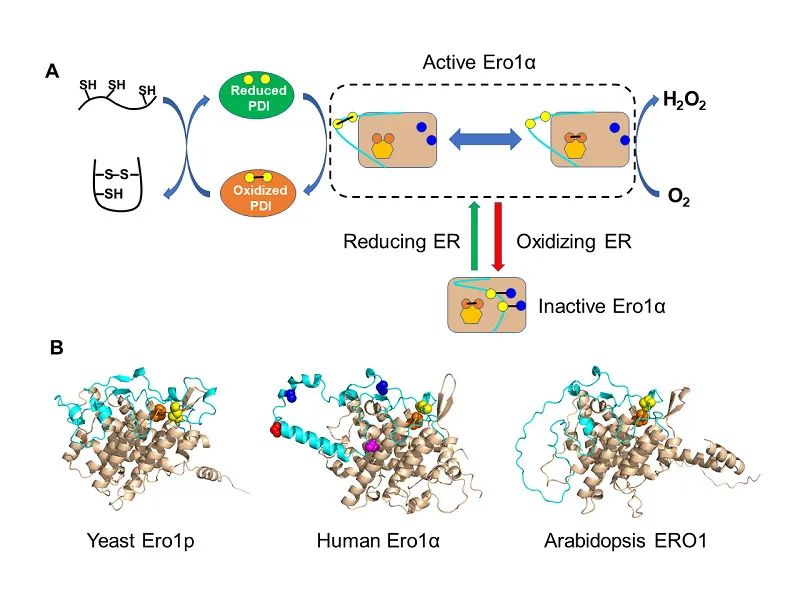 ▲图1. Ero1氧化酶的功能和结构
4.PDI活性的调控及PDI家族成员的协同作用
(1) PDI双重活性的结构基础
PDI既是酶也是分子伴侣。PDI能催化二硫键的氧化、还原和异构,还能发挥分子伴侣活力帮助底物折叠或抑制其错误聚集 [6]。典型的PDI由四个硫氧还蛋白(Trx)结构域a,b,b',a'以及一段b'和a'之间的x连接区组成,其中a和a'结构域各含有一个-CGHC-活性中心。酵母和人PDI的晶体结构显示,四个Trx样结构域呈“U”形排列(图2A)。还原的PDI呈现紧凑的构象,而氧化的PDI表现为相对开放的构象,暴露了b'结构域的疏水口袋。氧化还原偶联的PDI构象变化有利于不同形状、大小和折叠状态的底物的结合和释放。此外,未折叠底物可诱导PDI形成面对面二聚体,形成疏水腔容纳底物。PDI固有的结构柔性解释了PDI作为ATP非依赖型分子伴侣的功能。此外,PDI分子含有多个中低亲和力结合位点,也有利于底物的迭代循环。
(2)PDI的活性调节
PDI 活性中心N端的Cys的解离常数较低,很容易受到氧化修饰,这些Cys修饰通常与疾病过程中PDI功能丧失有关。然而,这些修饰在体内的化学计量尚不清楚,它们是否在疾病发展中发挥特定作用,抑或仅仅反映了全局性的氧化应激尚不清楚。王志珍/王磊团队的最近研究表明,PDI的酶和分子伴侣活性可以被Fam20C介导的磷酸化修饰切换 [7]。位于PDI分子x连接区的 Ser357在内质网应激条件下可以被Fam20C磷酸化,使得PDI在结构上从“U”形转变为更加开放的“L”形,在功能上从一个催化蛋白质氧化折叠的氧化还原酶转变为一个抑制错误折叠蛋白聚集的分子伴侣,即从“Foldase”转变为“Holdase” (图2B)。值得注意的是,人PDI中的Ser357在所有其它包含x连接区的PDI家族成员中都是保守的,磷酸化修饰对这些PDI同源物活性和功能的影响还有待进一步研究。
(3)PDI家族蛋白的协同作用
酵母有5个PDI,其中Pdi1p在细胞内主要处于氧化状态,其主要功能是催化二硫键氧化而不是异构。人PDI家族有20个成员,由于人细胞中二硫键的高复杂度,PDI必须同时行使催化二硫键氧化和异构的作用。有意思的是,人Ero1α和Ero1β都以剂量依赖性的方式加速底物二硫键的氧化速率,但不影响PDI的异构酶活性。这是由于Ero1α和Ero1β偏好氧化PDI的a'结构域活性中心来介导底物二硫键氧化,但几乎不氧化a结构域,故其主要发挥异构酶活力,从而保证蛋白质氧化折叠的高效性和保真性。基于生物化学和结构生物学数据的分子对接模型进一步证实了这一观点(图2C)。
近年来的研究显示不同的PDIs之间也表现出协同作用。例如具有串联a型结构域的人PDI家族蛋白,尤其是ERp46和P5,能快速催化二硫键形成,但容易出错,ERp46/P5可以和PDI协同加速整个氧化折叠过程。植物PDI-M/S蛋白可以高效地接受ERO1提供的氧化力来催化二硫键的形成,但异构酶活力较低。而具有典型的abb'xa'结构域排列的PDI-L成员则更多的扮演异构酶的角色。PDI-M/S和PDI-L成员的协同作用使植物能够快速、精确地生产含多对二硫键的蛋白质 [8]。
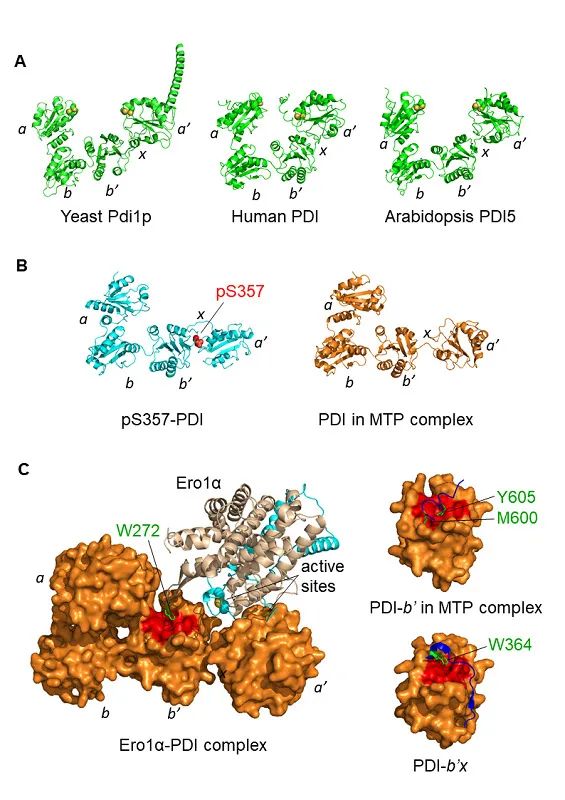 ▲图2. PDI的结构
5.蛋白质氧化折叠保真性在生理和病理条件下的作用
无论是在动物细胞还是植物细胞中,敲除ERO1基因都会显著降低内质网的EGSH, 证明在生理条件下主要是由Ero1氧化酶维持内质网的氧化力。PDI家族的生理功能则更为复杂,许多含二硫键底物蛋白的正确折叠都依赖于特定的PDI分子。例如,胰岛β细胞中PDI敲除会导致胰岛素原形成二硫键连接的高分子量复合物,低密度脂蛋白受体的错误二硫键还原和正确折叠需要ERdj5, 而分泌型IgM组装过程中需要ERp44对其非天然二硫键进行重排。这些例子都告诉我们,生理条件下PDI主要是发挥异构酶功能。PDI不直接生产二硫键,而是一个负责任的二硫键“搬运工”。值得一提的是,在细胞中敲除PDI并不会导致 EGSH的明显变化,提示哺乳动物细胞内质网的氧化还原稳态维持机制比过去认为的更加多样、冗余和复杂。
Ero1和PDI蛋白在许多类型的癌症中都高表达。鉴于人类细胞表达多种PDI同源蛋白,因此以PDI为靶点的抑制剂作为抗癌治疗缺乏足够的特异性。破坏Ero1α-PDI相互作用可能是一种更特异、更有效的抗癌策略 [9]。基于组织特异性PDI敲除小鼠的研究表明,血管内皮细胞来源的PDI与心血管疾病有关,包括血栓和血管炎症。王志珍/王磊团队的最新研究发现Ero1α和PDI在血小板表面构成细胞外电子传递通路,并介导血小板聚集 [10]。因此,与仅靶向PDI的抗血栓抑制剂相比,开发小分子抑制剂靶向Ero1α和PDI之间的功能互作可能是一种新的抗血栓治疗策略。内质网是调控病毒与宿主细胞互作的关键细胞器,PDI被报道能促进多种病原体的入侵,在病毒表面糖蛋白的氧化折叠中也有作用。值得一提的是,冠状病毒刺突(S)蛋白需要形成二硫键才能正确折叠和三聚体化,最近有研究表明破坏新冠病毒S 蛋白的关键二硫键能降低其与宿主受体的结合,从而减弱病毒的传染性。针对Ero1-PDI机器在S蛋白氧化折叠中的研究,将有助于开发广谱抗冠状病毒药物。
总结与未来展望
在过去的十多年里,我们对内质网特有的酶系统如何维持蛋白质氧化折叠的效率和保真性有了更深刻的理解。Ero1-PDI氧化折叠机制已经在酵母、植物和哺乳动物中被揭示。作为一种内质网的主要氧化酶,Ero1决定了内质网较为氧化的环境,其活性被其“调控环”上的各种PTMs精确控制。在高等真核生物中,丰富的PDI家族成员在蛋白质氧化折叠过程中表现出分工不同,它们协同工作以保证二硫键形成的高效性和保真性(图3)。然而,各个PDI家族成员在不同生理和病理条件下的确切作用仍不清楚。更多调控Ero1-PDI活性的机制有望被发现,如新的PTMs。新技术将有助于确定不同PTMs的准确位点和化学计量,以及它们在调节蛋白质氧化折叠中发挥的病理生理作用。此外,更好地理解蛋白质氧化折叠的调节机制,以及开发靶向Ero1-PDI相互作用的特异性抑制剂必将有助于相关疾病的治疗。
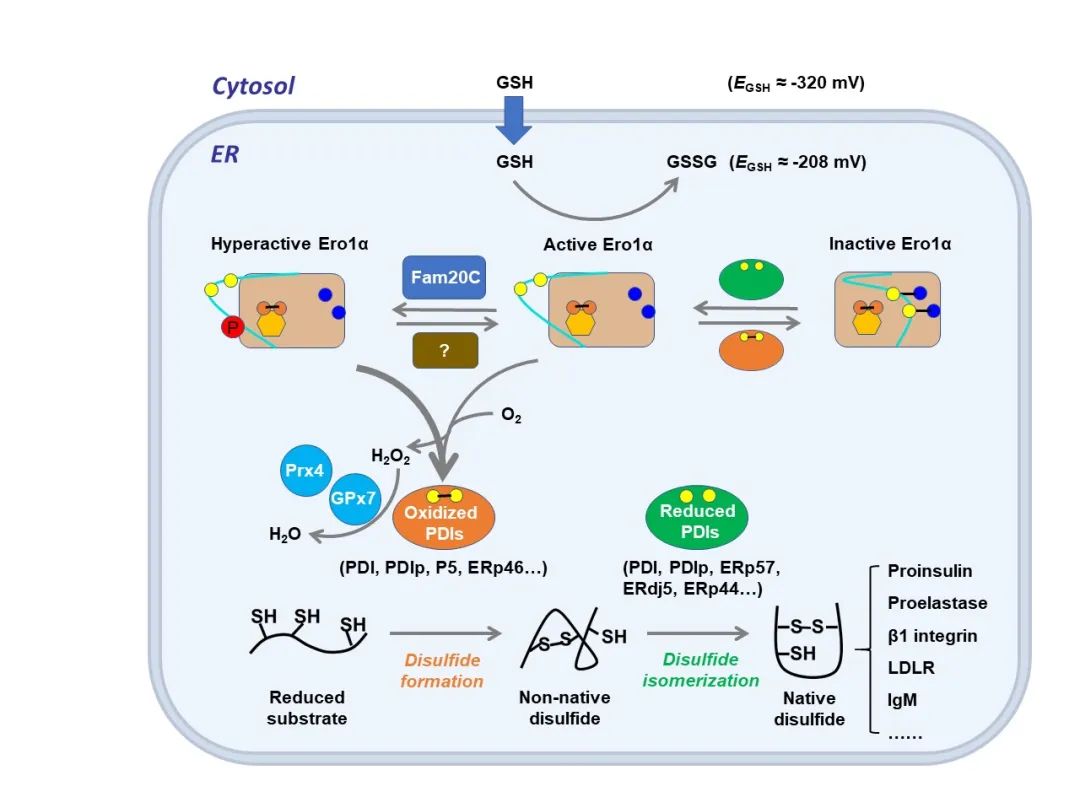 ▲图3. Ero1α-PDI维持人细胞内质网中蛋白氧化折叠保真性和氧化还原稳态
本文参考文献(上线划动查看)
1.Borges, C.R. and D.F. Lake, Oxidative protein folding: nature's knotty challenge. Antioxid Redox Signal, 2014. 21(3): p. 392-5.
2.Delaunay-Moisan, A., A. Ponsero, and M.B. Toledano, Reexamining the Function of Glutathione in Oxidative Protein Folding and Secretion. Antioxid Redox Signal, 2017. 27(15): p. 1178-1199.
3.Wang, L., et al., Reconstitution of human Ero1-Lalpha/protein-disulfide isomerase oxidative folding pathway in vitro. Position-dependent differences in role between the a and a' domains of protein-disulfide isomerase. J Biol Chem, 2009. 284(1): p. 199-206.
4.Zhang, J., et al., Secretory kinase Fam20C tunes endoplasmic reticulum redox state via phosphorylation of Ero1alpha. EMBO J, 2018. 37(14).
5.Qiao, X., et al., ER reductive stress caused by Ero1alpha S-nitrosation accelerates senescence. Free Radic Biol Med, 2022. 180: p. 165-178.
6.Wang, L., X. Wang, and C.C. Wang, Protein disulfide-isomerase, a folding catalyst and a redox-regulated chaperone. Free Radic Biol Med, 2015. 83: p. 305-13.
7.Yu, J., et al., Phosphorylation switches protein disulfide isomerase activity to maintain proteostasis and attenuate ER stress. EMBO J, 2020. 39(10): p. e103841.
8.Fan, F., et al., Two protein disulfide isomerase subgroups work synergistically in catalyzing oxidative protein folding. Plant Physiol, 2022. 188(1): p. 241-254.
9.Zhang, Y., et al., Targeting the functional interplay between endoplasmic reticulum oxidoreductin-1alpha and protein disulfide isomerase suppresses the progression of cervical cancer. EBioMedicine, 2019. 41: p. 408-419.
10.Wang, L., et al., The extracellular Ero1alpha/PDI electron transport system regulates platelet function by increasing glutathione reduction potential. Redox Biol, 2022. 50: p. 102244.
 相关论文信息
相关研究发表在Cell Press细胞出版社旗下期刊Trends in Biochemical Sciences,
▌论文标题:
Oxidative protein folding fidelity and redoxtasis in the endoplasmic reticulum
▌论文网址:
https://www.cell.com/trends/biochemical-sciences/fulltext/S0968-0004(22)00168-2
▌DOI:
https://doi.org/10.1016/j.tibs.2022.06.011
论文作者介绍
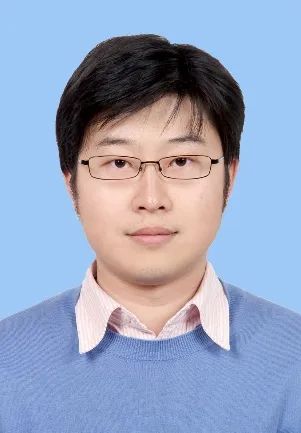 王磊
研究员
王磊,中国科学院生物物理研究所,研究员,博士生导师。2004年在武汉大学生物学基地班获学士学位,2009年在中科院生物物理所获博士学位。历任中科院生物物理所助理研究员、副研究员、研究员、课题组长。2021年获国家优秀青年科学基金资助,并入选中科院青年创新促进会优秀会员。王磊研究员聚焦内质网稳态与人类健康,在内质网氧化还原酶的功能与调控、内质网稳态的调节机制(特别是通过分泌途径磷酸化调节)、内质网稳态与衰老和相关疾病等研究方面取得了一系列创新成果。以通讯作者身份在PNAS, EMBO J, Redox Biol, Aging Cell, EBioMedicine, JBC等国际重要学术期刊发表学术论文20余篇,多次在国际国内学术会议作邀请报告。
本文为澎湃号作者或机构在澎湃新闻上传并发布,仅代表该作者或机构观点,不代表澎湃新闻的观点或立场,澎湃新闻仅提供信息发布平台。申请澎湃号请用电脑访问http://renzheng.thepaper.cn。

- 报料热线: 021-962866
- 报料邮箱: news@thepaper.cn
互联网新闻信息服务许可证:31120170006
增值电信业务经营许可证:沪B2-2017116
© 2014-2026 上海东方报业有限公司